资源中心
为您提供外泌体技术介绍(含视频),行业高分文献解读,常见技术和合作问题回复,送样说明及文献奖励申请方法。
|
文献解读丨抗人NTPDase2的多克隆和单克隆抗体的产生和表征
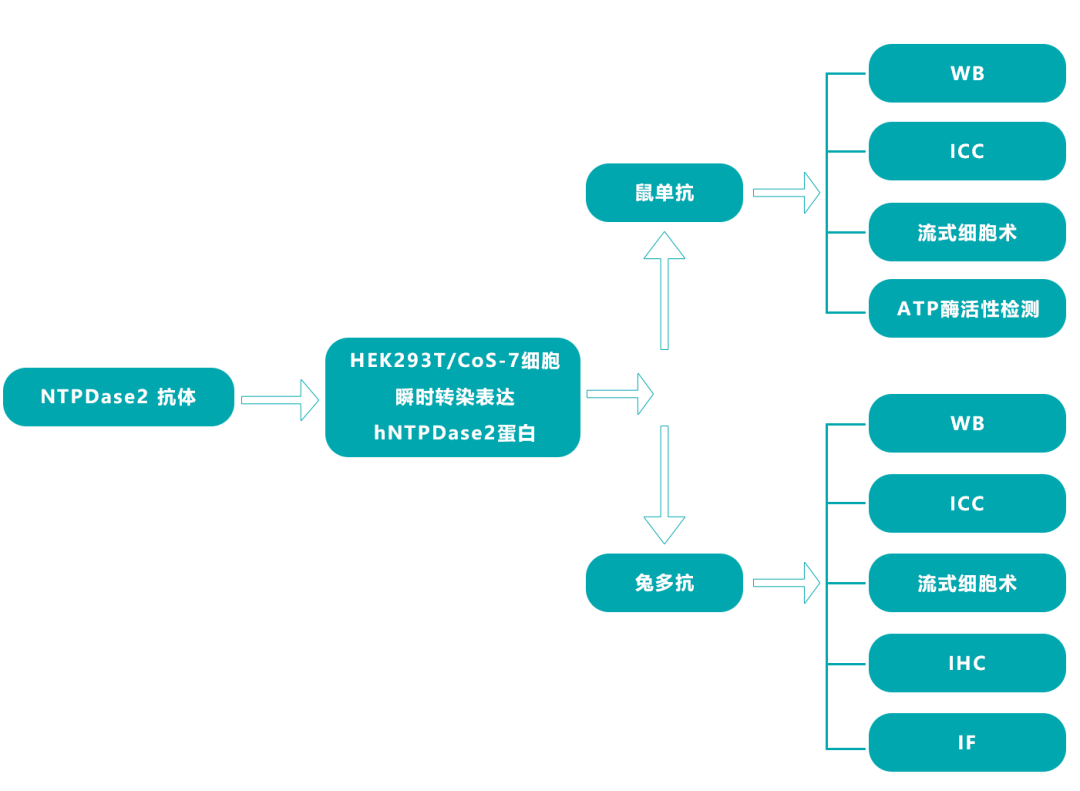
摘要 三磷酸核苷二磷酸水解酶 2 (NTPDase2) 是 E-NTPDase 家族的八个成员之一(表示为 NTPDase1 至 8)。 NTPDase1、NTPDase2、NTPDase3 和 NTPDase8 是质膜的整合蛋白 ,它们协同作用水解细胞表面的核苷酸。但每一种都表现出不同的亲和力和能力,这些差异导致 P2 受体和相关功能的不同激活 。 NTPDase2 能有效地水解三磷酸核苷( ATP , UTP),但对二磷酸衍生物的水解却很差 。这些生化特征分别促进了附近的 ADP 和 UDP 转导受体如 P2Y1 和 P2Y6 的激活。 动物模型中的大量研究表明,NTPDase2 调节整个身体的关键细胞间信号传导过程。例如,NTPDase2 在血管外膜细胞表面表达,在此,它被认为通过促进血小板上 ADP 受体( P2Y1 和 P2Y12 )的激活而在血管完整性中发挥作用 。 NTPDase2 也由 1 型味蕾细胞表达 ,它参与味觉转导 。 NTPDase2 的其他建议功能包括促进非洲爪蟾的眼睛形成而不是小鼠、调节神经元发育 和调节大鼠胆管上皮细胞的增殖 。 NTPDase2 也位于肾脏内的 Bowman 囊中,但其功能尚未确定 。尽管最近开发的 NTPDase2 KO 小鼠将有助于识别 NTPDase2 的功能,但 NTPDase2 的研究,特别是在人类中的研究,仍然受到缺乏工具的阻碍。 技术线路
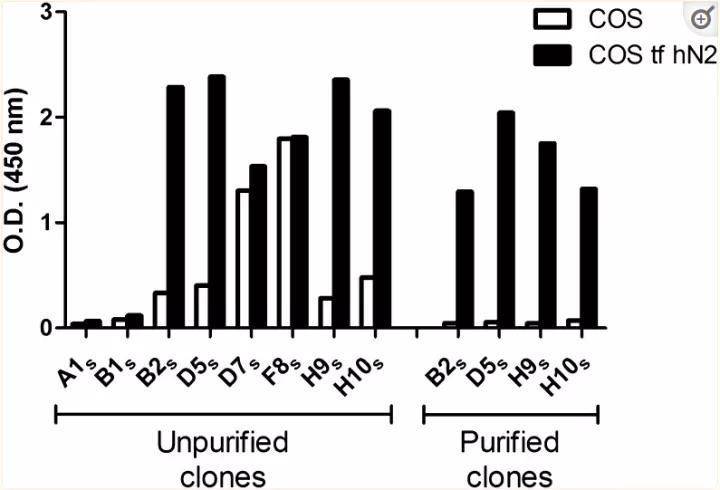
文献思路 1.人NTPDase单克隆抗体的产生和表征 之前尝试使用 cDNA 免疫产生单克隆抗体没有成功。因此,我们通过 HEK 293T 细胞瞬时转染表达人 NTPDase2 蛋白的进行加强免疫,从而提高抗体的效价。该程序是用下列小鼠进行的,第三次注射后12天收集的血清在非还原条件下通过蛋白质印迹测定具有最高滴度。从脾中收集的 B 细胞与骨髓瘤细胞融合,未纯化的杂交瘤细胞的上清液通过 ELISA 进行测试,筛选出未亚克隆的8个杂交瘤细胞。杂交瘤细胞通过连续的稀释重复亚克隆,以确保选择的克隆是纯的,并通过ELISA技术鉴定进一步检测选出最好的4个细胞株(hN2-B2s、hN2-D5s、hN2-H9s和hN2-H10s)。如图1 .我们进行了 ELISA 测定确定这些单克隆抗体的同种型,并发现四种杂交瘤均产生 IgG2b。
图1:鉴定产生抗NTPDase2抗体的杂交瘤。 通过ELISA用人NTPDase2质粒转染(实心条)或未转染(空心条)的COS-7细胞测试杂交瘤的上清液,并在450nm处测量吸光度。 左侧的组显示了在第一次筛选后从杂交瘤(未克隆)收集的上清液获得的一些代表性数据,右侧的数据组显示了在重复克隆每个阳性杂交瘤后在克隆上获得的测量值。 产生检测人 NTPDase2 的抗体的杂交瘤被鉴定为克隆 B2s、D5s、H9s 和 H10s 结论:用来转染或未转染编码人 NTPDase2 的质粒的 COS-7 细胞的裂解物通过蛋白质印迹测试四种人 NTPDase2 的单克隆抗体。
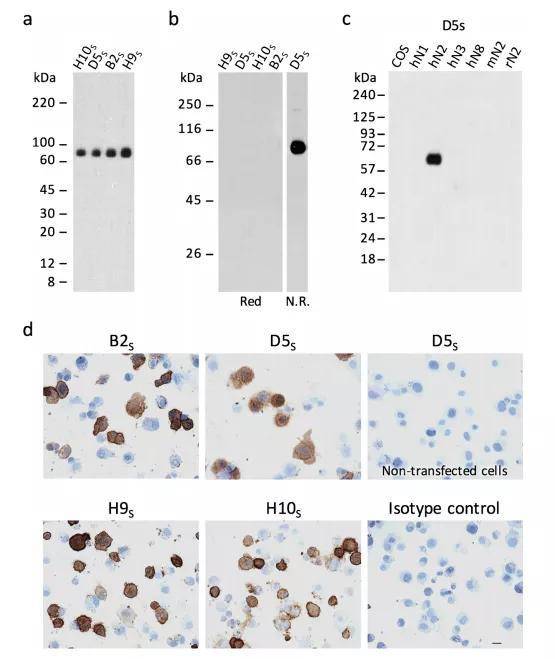
图2 通过蛋白质印迹和免疫细胞化学检测小鼠单克隆抗体对人 NTPDase2 的特异性。 如图2a所示,四种单克隆抗体仅在非还原条件下特异性识别人NTPDase2。 事实上,在存在 β-巯基乙醇的情况下没有检测到信号。如图 2b,在来自 COS-7 细胞的裂解物上测试这些单克隆抗体与其他 NTPDases 的质膜整合蛋白(即 NTPDase1、-3、 -8)潜在交叉反应性,及表达小鼠和大鼠 NTPDase2 的质粒。如图 2c 所示,hN2-D5s 没有与向相关 NTPDases 发生反应如图2c。其他三种单克隆抗体也获得了类似的结果。四种单克隆抗体( hN2-B2s、hN2-D5s、hN2-H9s 和 hN2-H10s )用转染人 NTPDase2 的 COS-7 细胞做免疫细胞化学,其结果均为阳性,在未转染的 COS-7 上都没有检测到信号(图2d)
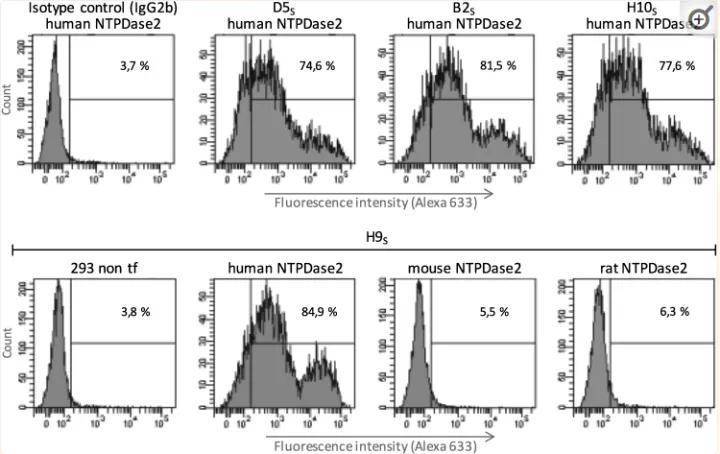
图3 流式细胞仪检测小鼠单克隆抗体对人 NTPDase2 的特异性 对未转染的 HEK 293T 细胞 (293 non tf) , hN2-D5s、hN2-B2s、hN2-H10s , hN2-H9s ,同种型对照 (IgG2b) 孵育的人、小鼠或大鼠 NTPDase2 细胞进行流式细胞术 浓度为 1 μg/mL。四个单克隆抗体对人 NTPDase2 具有特异性(偏差值在70%以上),转染小鼠或大鼠 NTPDase2 的 HEK 293T 细胞上未检测到变化,用其他三种单克隆抗体获得了类似的结果。
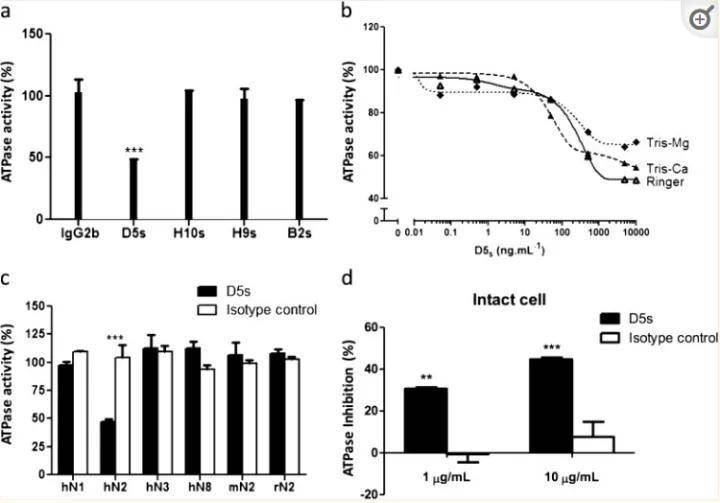
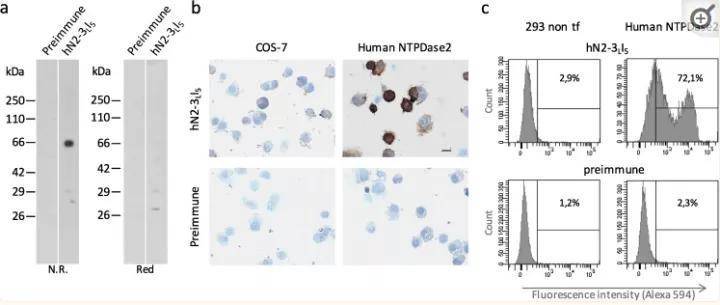
图4 hN2-D5s 特异性抑制人 NTPDase2 其中一种单克隆抗体将人 NTPDase2 的 ATPase 活性降低了一半(图 4a)。在 Ringer 缓冲液、Tris-Ca缓冲液和 Tris-Mg缓冲液中测试了hN2-D5s 的抑制作用。在 Ringer 和 Tris-Ca 缓冲液抑制率相近。而Tris-Mg 缓冲液中对人 NTPDase2 的抑制率略低(图4b)。然后选择林格缓冲液用于测定:对表达不同种属NTPDaes的细胞裂解液进行所有活性测试。 hN2-D5s 与来自其他人 NTPDases(NTPDase1、-3 和 -8)和不同物种 NTPDase2(小鼠,大鼠)的细胞裂解物一起孵育时,没有检测到抑制作用,但 hN2-D5s抗体和同种型对照存在下,抑制百分比是有抑制的。hN2-D5s抗体还具有阻断位于细胞表面的人NTPDase2活性的能力(图4d)。 2.人NTPDase多克隆抗体的产生和表征 通过 cDNA 免疫三只兔子产生了针对人 NTPDase2蛋白多克隆抗体( hN2-1l、hN2-2l 和 hN2-3l )。分别在第四次 (I4) 和第五次注射 (I5) 后收集血清,分装并在 -80 °C 下与 10% 甘油一起储存。 这些抗体的特异性通过下文详述的技术进行测试。 首先使用转染细胞的裂解液在非还原条件下通过蛋白质印迹检测抗人 NTPDase2 的多克隆兔血清。免疫血清hN2-3LI5(图5a),hN2-2LI5也获得了强阳性反应。 hN2-1LI5 血清的信号较弱。至于单克隆抗体,多克隆抗体在还原条件下不识别人NTPDase2蛋白。然后通过免疫细胞化学对这三只兔子的血清进行检测,未转染的COS-7细胞,表达人 NTPDase2 的COS-7xibao 为样本,结果: hN2-3LI5 与转染人 NTPDase2 的 COS-7 细胞反应阳性,未转染的COS-7细胞,阴性血清均为阴性。而hN2-2LI5 和 a与 hN2-1LI5 的反应较弱。非转染的细胞与免疫血清一起孵育,hN2-2LI5 抗血清得到了相似的结果,hN2-1LI5 观察到了较弱的阳性信号。
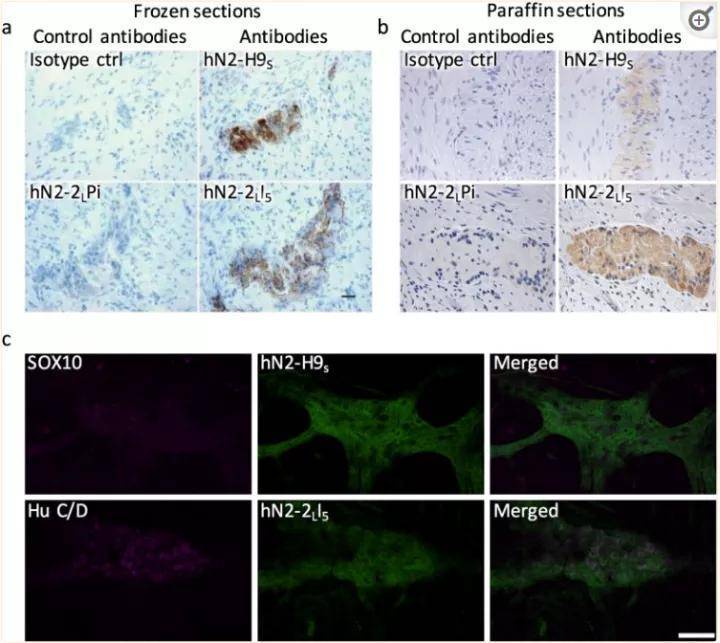
图5 通过蛋白质印迹、免疫细胞化学和流式细胞术检测兔多克隆抗血清 hN2-3LI5 对人 NTPDase2 的特异性 在非还原条件 (N.R.)(左图)或还原条件(红色)(右图)中孵育的用编码人 NTPDase2 的质粒转染的 COS-7 细胞的裂解物(一个大孔 120 μg)的蛋白质印迹 与兔多克隆抗人 NTPDase2 抗体 hN2-3LI5 或其免疫前血清(均为 1:500)。 b 在未转染的 COS-7 细胞(左图)或用人 NTPDase2 编码质粒(右图)转染并用 hN2-3LI5(上图)或其免疫前血清(下图)(均为 1:500)探测的免疫细胞化学 . 比例尺代表 25 μm。 c 对未转染的 HEK 293T 细胞(293 non tf)或用 hN2-3LI5(上图)或其免疫前血清(下图)孵育的人 NTPDase2 细胞转染的流式细胞术(下图)(均为 1:100) 3.单抗和多抗的免疫组化及免疫荧光 这些单克隆和多克隆抗体在人体肠道上通过免疫组织化学测试,以确定表达 NTPDase2 的细胞。 图6 显示单克隆抗 hN2-H9s和兔多抗hN2-2LI5在冷冻切片(图6a)和石蜡切片(图6b)均检测到人结肠神经结构中存在NTPDase2蛋白,尽管后者的反应较弱。 在冷冻切片中,用其他三个杂交瘤和另外两个兔血清获得了类似的结果。在石蜡切片中,hN2-H9s 的反应最强烈,其次是 hN2-D5s 和 hN2-B2s,hN2-H10s)未获得信号。 为了确定 NTPDase2 存在于神经元细胞或周围的神经胶质细胞中,分别使用神经胶质细胞标记物 SOX10 和神经元标记物 Hu C/D对人空肠的整个肠肌间丛进行共定位实验。将兔体内产生的抗SOX10抗体与抗NTPDase2单克隆抗体进行双重染色,并用兔NTPDase2抗血清检测小鼠的Hu C/D抗体。图6c结果表明NTPDase2蛋白由人空肠中神经结构周围的神经胶质细胞表达。
图6 NTPDase2 在人肠道中的免疫定位 使用单克隆抗体 hN2-H9s(上图)或多克隆抗体 hN2-2lI5(下图)在冷冻切片 (a) 或石蜡 (b) 人结肠或人空肠肌间丛 (c) 中定位人 NTPDase2。 IgG2b 无关抗体和免疫前血清 (hN2-2lPi) 用作阴性对照。 c 胶质细胞标志物 SOX10 和神经元标志物 Hu C/D 用于共定位。 用苏木精水溶液 (a) 对细胞核 (蓝色) 进行复染。 比例尺代表 20 μm (a, b) 和 100 μm (c) 实验结果 总之,我们已经产生了三种兔抗血清和四种杂交瘤(至少有两种是不同的),它们产生了针对人 NTPDase2 的 IgG2b 抗体。本研究中产生的抗体至少对于蛋白质印迹、流式细胞术、免疫细胞化学和非还原条件下的免疫组织化学是特异性和有效的。这些抗体对人 NTPDase2 具有高度特异性,因为它们不与任何其他相关的 NTPDases 发生交叉反应。此外,一种杂交瘤 hN2-D5s 产生了一种特异性抑制人 NTPDase2 的抗体。总之,我们已经生成了强大的工具来研究人类 NTPDase2。 |